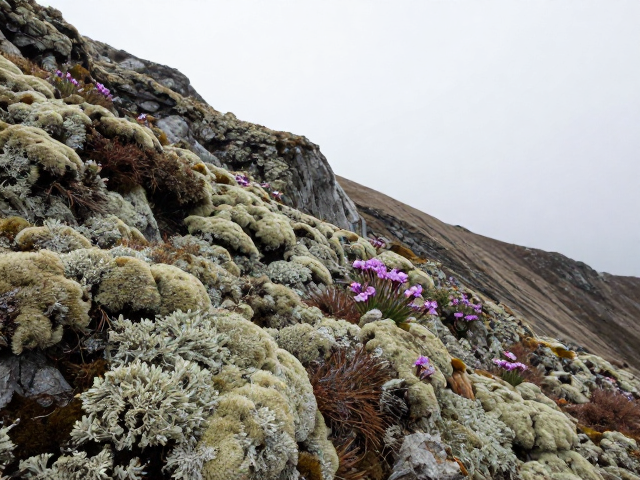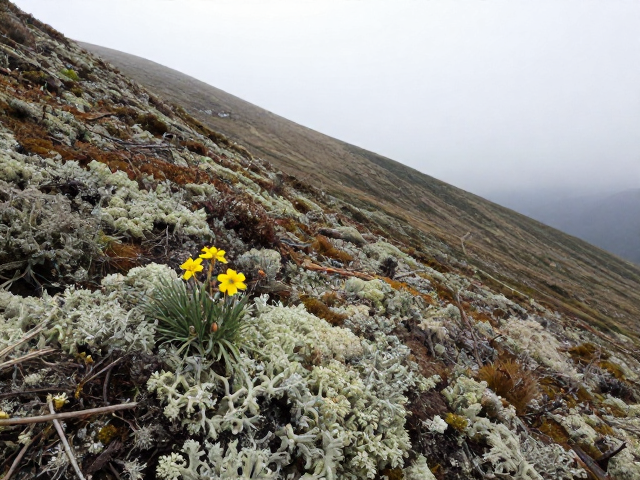
高山森林苔藓地衣,花期随海拔推迟的生态奥秘
海拔梯度下的微气候重塑
高山森林的垂直分布并非简单的温度递减,而是由气压、光照强度、湿度以及风速共同构建的复杂微气候系统。随着海拔升高,大气层对太阳辐射的削弱作用减弱,紫外线辐射显著增强,同时气温呈负相关下降,这种环境压力迫使植物调整其生理代谢机制。苔藓与地衣作为先锋生物,其叶片结构通常仅由单层或几层细胞构成,缺乏真正的根系和周皮保护,这使得它们对水分得失和极端环境的变化极为敏感,必须依赖高空气湿和频繁的云雾凝结来维持生存。
在这种高海拔环境中,水分形态发生了根本性转变,液态降水往往以雾滴、毛毛雨或霜的形式存在,而非稳定的地表径流。苔藓和地衣通过其庞大的表面积直接吸收空气中的水分,这一特性使得它们成为高山生态系统中关键的“生物海绵”。当海拔升高至云雾带,空气相对湿度常年保持在90%以上,这种持续的高湿环境极大地降低了植物的蒸腾作用,为那些无法在干旱条件下存活的喜湿物种提供了理想的栖息地。这种由海拔决定的水分可利用性,直接筛选出台藓地衣的优势群落,形成了与低海拔森林截然不同的植被结构。
物候延迟的热力学机制
植物的花期严格受限于积温,即植物从休眠期开始到开花所需积累的有效温度总和。在高山森林中,春季气温回升的速度远低于平原地区,导致植物打破休眠、启动花芽分化的生理过程被显著推迟。对于依附于树干或岩石表面的苔藓和地衣而言,虽然它们不像显花植物那样有典型的“花期”,但其孢子萌发、配子体发育以及地衣的有性生殖过程(如子囊壳的形成)同样受到温度和光周期的严格调控。海拔每上升100米,气温平均下降约0.6℃,这意味着高海拔地区的春季物候期比低海拔地区推迟数周甚至数月。
这种物候延迟并非孤立现象,而是与高山季节的短暂性紧密相关。高山地区的无霜期短,冬季漫长且严寒,植物必须利用有限的温暖窗口期完成生命周期中的关键阶段。苔藓和地衣通过延缓生殖发育,避免在恶劣天气中消耗宝贵的能量储备。例如,某些高山苔藓会在夏季短暂的高温期加速生长,而在秋季来临前停止孢子释放,以等待更适宜的来年春季。这种时间策略确保了繁殖成功率,避免了因过早发育导致幼苗在霜冻中死亡的风险,体现了生物对高山极端环境的精妙适应。
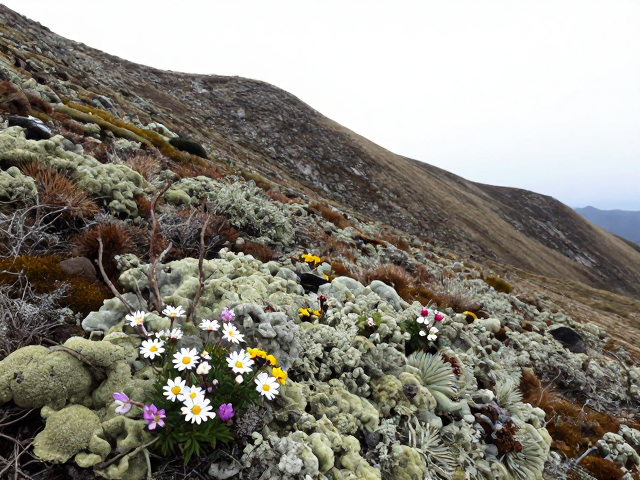
共生关系的海拔适应性
地衣是真菌与藻类或蓝细菌的共生复合体,这种关系在高海拔环境中展现出极强的稳定性。真菌提供结构支撑和水分保持能力,而光合伙伴负责提供碳水化合物。随着海拔升高,光照强度增加但热量不足,地衣的光合效率会受到限制,因此高海拔地衣往往具有特殊的色素保护机制,以应对强紫外线伤害。苔藓则通过其假根固定在岩石或树皮表面,形成致密的垫状结构,减少水分蒸发并抵御强风。
在高山森林的树干和岩石表面,苔藓和地衣常常形成复杂的群落结构,不同物种之间存在严密的空间竞争和资源分配。低海拔物种通常生长迅速,但在高海拔的低温和强光下难以存活,而高海拔物种则生长缓慢,但具有极强的抗逆性。这种群落结构的变化反映了环境筛选的压力,只有那些能够高效利用有限资源并抵抗物理损伤的物种才能在高海拔森林中占据主导地位。苔藓地衣的分布不仅受环境因子影响,还受到林冠郁闭度的调节,开阔地带的地衣更为繁盛,而密林深处则苔藓占优,这种细微的生态位分化进一步丰富了高山森林的生物多样性。